LNP内体逃逸:拼 “更快酸响应”,还是赌 “更强膜破坏”?真相是 —— 你得两个都要
可围绕可电离脂质头基、连接子、疏水尾和辅助脂质建立结构—功能筛选,并通过表观 pKa、pH 依赖膜扰动、Gal8 募集和胞质核酸定量定位逃逸瓶颈。
一、酸响应和膜破坏分别解决什么问题?
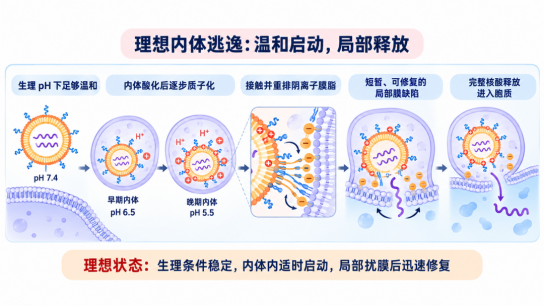
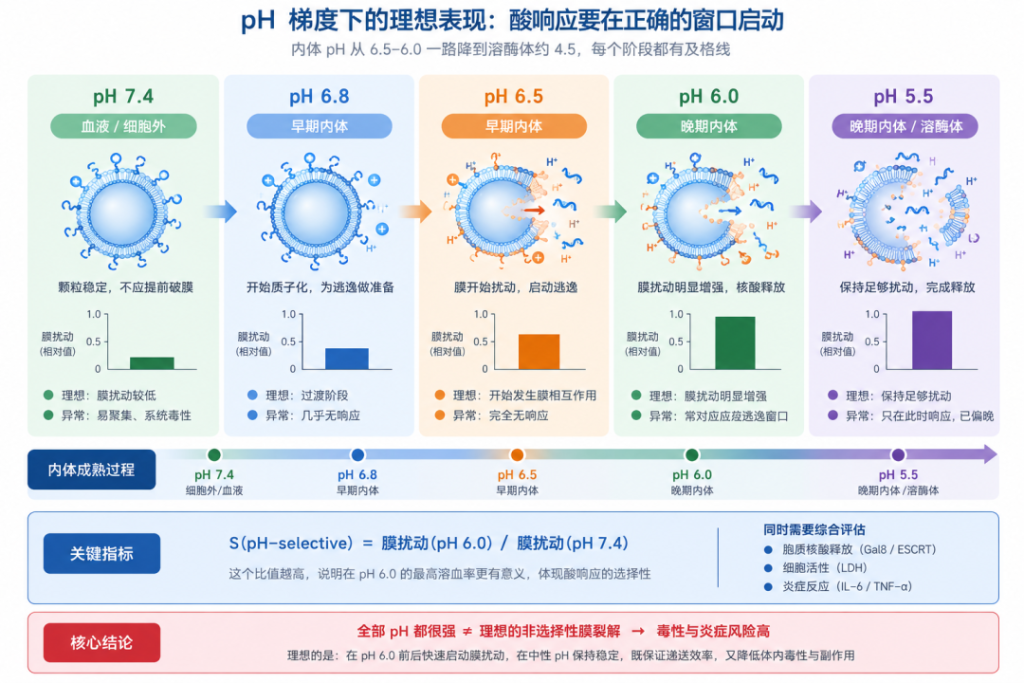
内体酸化过程中,pH 大致从早期内体的 6.5–6.0 下降至晚期内体和溶酶体的约 6.0–4.5。可电离脂质在此过程中逐渐质子化,随后才能与内体膜中的阴离子脂质发生作用:
内体逃逸五个环节的分工与对应调节位点
模型膜研究显示,酸性条件可促进 MC3 类 LNP 解体、脂质插入和核酸向膜界面转移;但只有质子化,并不自动等于形成了足以释放核酸的膜缺陷。
将表观 pKa与pH 依赖性膜扰动能力分开评价,并结合内体膜损伤、胞质释放等指标交叉验证,避免仅依据 TNS 法测得的 pKa 或单一共聚焦图像判断内体逃逸效率。
二、什么时候“更快的酸响应”更重要?
“更快”包含两种含义:①在相对较高的内体 pH 下便开始质子化;②酸敏连接子在内体中快速水解,使颗粒或 PEG 层及时解体。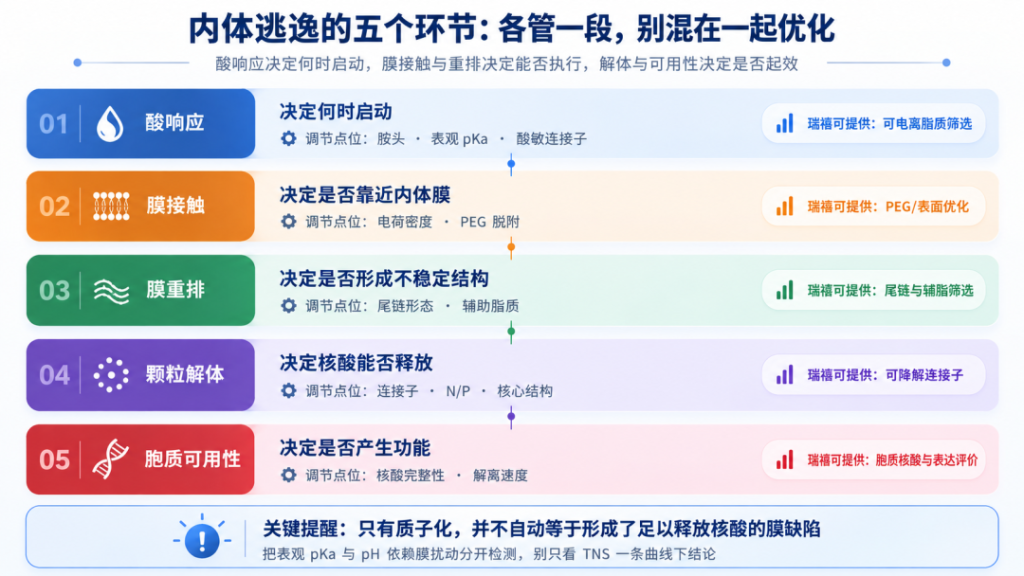
适合优先提高酸响应的信号:
- 表观 pKa 明显偏低;
· LNP 已进入细胞,但 Gal8 募集和胞质核酸均低;
· 到达晚期内体后才开始解体,核酸已明显降解;
· PEG 层或 LNP 核心过于稳定,内体中不能及时暴露可电离脂质;
· 配方在 pH 5.5 下有膜扰动,但在 pH 6.5–6.0 几乎没有响应。
酸响应怎么调:
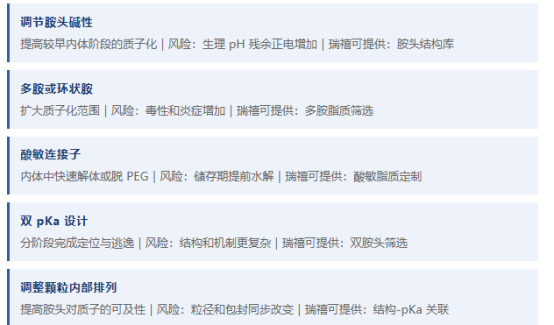
注意:表观 pKa 不是越高越好。若 LNP 在 pH 7.4 下已有较强正电,会增加蛋白吸附、非特异摄取、补体反应和膜Poison 性;触发过早还可能使 mRNA 在逃逸前暴露并降解。酸降解 LNP 研究(azido-acetal 连接子,内体内数分钟水解)的优势不是”质子化更多”,而是让酸响应与颗粒解体同步发生。
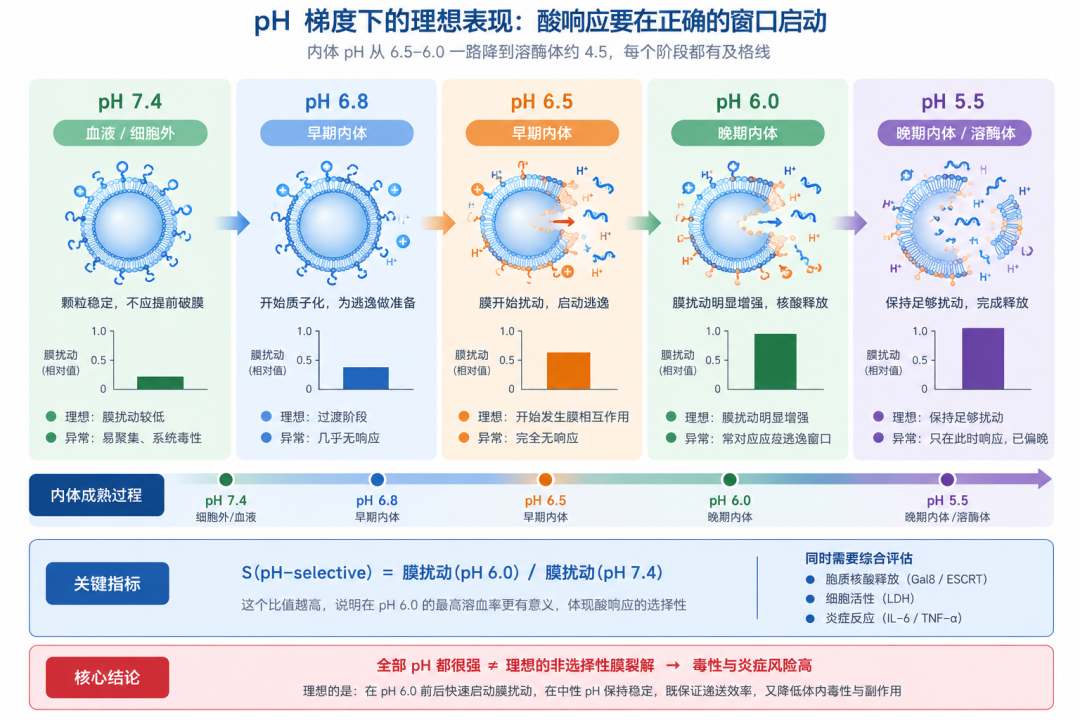
建立 pH 7.4、6.8、6.5、6.0、5.5 梯度评价体系,同步检测 LNP 表观电荷、粒径变化、FRET 解体与核酸释放,判断酸响应启动窗口究竟偏早还是偏晚,并据此优化脂质结构与处方参数。
三、什么时候“更强的膜破坏能力”更重要?
如果 LNP 表观 pKa 已在合理范围,酸化后也能正常质子化,但 Gal8 募集、膜泄漏和胞质核酸仍然偏低——瓶颈更可能是:脂质带电了,却没有形成足够的膜曲率、脂质交换和非双层结构。
这时继续提高胺头碱性,可能只增加正电和Poison 性;更有效的方向是调整脂质空间构象和膜融合能力:
- 增加疏水尾支化程度;引入不饱和尾链;
· 调节尾链长度与数量;采用锥形或楔形脂质构象;
· 使用 DOPE 等具有非双层相倾向的辅助脂质;
· 降低过度稳定的 DSPC 或强锚定 PEG 比例;
· 调整胆固醇及其类似物;引入膜扰动型两性离子脂质。
脂质头基决定质子化行为,而脂质形状与堆积方式决定其能否促进倒六方相等不稳定膜结构。
pH 梯度下膜扰动的及格线:目标是高”酸性/中性膜扰动比”,而不是较高溶血率
结合 pH 依赖溶血、脂质体泄漏、膜融合 FRET 与 Gal8 募集,系统比较不同疏水尾链、辅助脂质及胆固醇比例对膜扰动强度与 pH 选择性的影响,区分“有效内体破膜”与“非特异性膜损伤”。
四、为什么“破膜越强”反而可能转染更差?
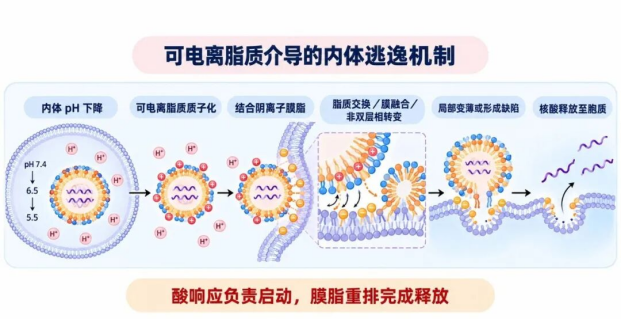
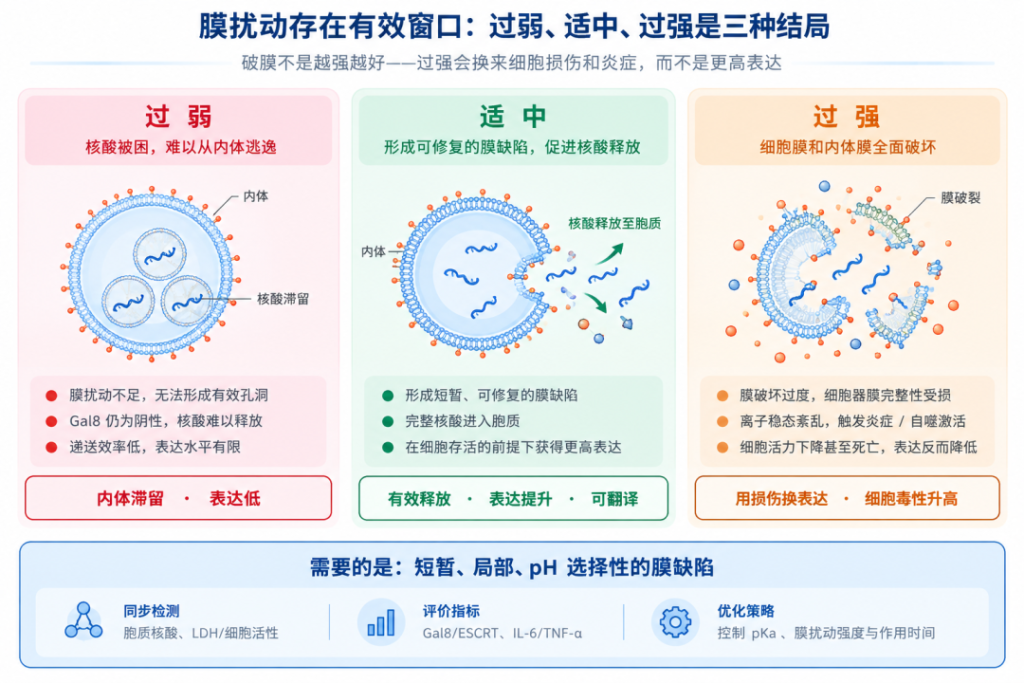
内体逃逸需要的是局部、短暂和具有 pH 选择性的膜缺陷,不是整个内体或细胞膜被全面破坏。三条失败链路:
失败一|生理条件下就开始破膜:膜活性过强 → 细胞膜和细胞器膜受损 → 离子稳态破坏 → 细胞死亡或翻译抑制 → 表达反而下降。
失败二|内体损伤触发快速修复:较小缺陷 → Gal8/ESCRT 募集 → 内体膜被修复 → 核酸仍留在囊泡中 → Gal8 阳性但胞质核酸不增加。
失败三|损伤过强触发Inflammation与自噬:严重膜损伤 → 危险信号与Inflammation通路激活 → 自噬/溶酶体清除增强 → 核酸被重新捕获或降解 → 重复给药耐受性下降。
研究提示,Galectin 募集所标记的部分内体损伤有利于 RNA 释放,但触发 ESCRT 修复的膜扰动并不一定产生有效逃逸——“出现膜损伤”与”核酸完成胞质转运”不能画等号。
膜扰动的三种结局:过弱被困、适中释放、过强换来的不是表达而是损伤
同步检测胞质核酸释放、LDH、细胞活性、Gal8/ESCRT、自噬及 IL-6、TNF-α,将有效内体逃逸与非特异性膜损伤、Inflammation反应区分开,避免出现“以细胞损伤换表达”的伪优化。
五、酸响应和膜破坏怎么配对筛选?
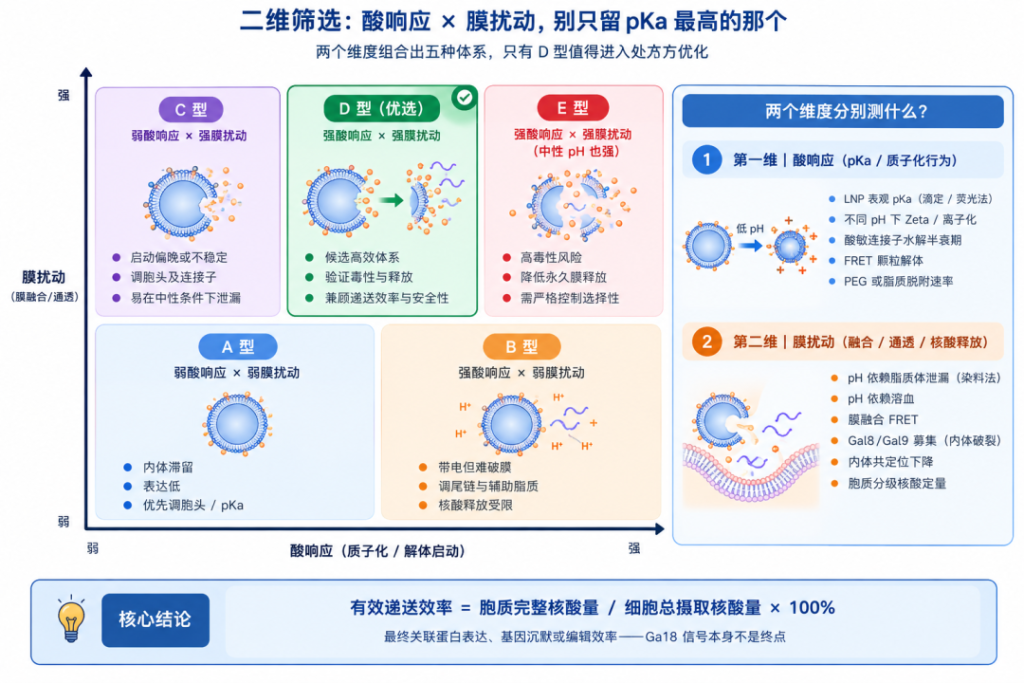
建议采用二维筛选,而不是先筛 pKa、再只保留 pKa 较高的脂质:第一维测酸响应(表观 pKa、不同 pH 下 Zeta/离子化、酸敏连接子水解半衰期、FRET 颗粒解体、PEG 脱附速度);第二维测膜扰动(pH 依赖脂质体泄漏、pH 依赖溶血、膜融合 FRET、Gal8/Gal9 募集、内体共定位下降、胞质分级核酸定量)。
以“表观 pKa × pH 选择性膜扰动”构建二维筛选矩阵,优先锁定兼具合适质子化窗口与有效膜扰动能力的候选可电离脂质,再进入 N/P、PEG 比例及辅助脂质的第二阶段处方优化。
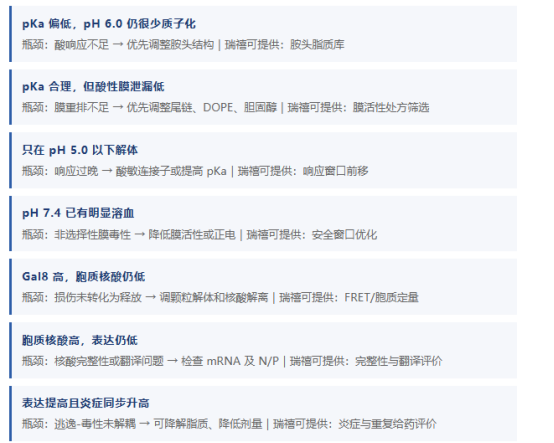
六、较终应该优先改哪个参数?
还要注意:胞质释放后,核酸能否从可电离脂质中及时解离同样重要。较新研究指出,某些体系的主要瓶颈可能是胞内 mRNA 解离,而不只是内体膜逃逸;提高可电离脂质比例可能反而增强 mRNA 结合并阻碍释放。
建立“细胞摄取—酸响应—膜扰动—胞质核酸释放—蛋白表达—Poison 性”六项评价指标,并根据具体瓶颈反向定位优化变量:摄取不足优先调整表面与处方,酸响应偏移优化胺头,膜扰动不足筛选连接子、疏水尾或辅助脂质,避免仅凭终点表达盲目改配方。
结论
先用酸响应保证 LNP 在正确位置启动,再用具有 pH 选择性的膜扰动完成释放。具体判断:
- pKa 偏低、启动太晚:优先增强酸响应;
· 已经正常质子化,但不破膜:优先增强膜融合与非双层相形成;
· 中性条件也强烈破膜:应降低膜活性,而不是继续追求逃逸;
· Gal8 很高但表达不高:检查颗粒解体、核酸完整性和胞质解离。
真正优秀的 LNP 并不是”酸响应较快”或”破膜较强”,而是具备一个窄而明确的功能窗口:血液中稳定且低膜Poison 性,进入早期至晚期内体后迅速启动,形成短暂局部膜缺陷,释放完整核酸,并在完成递送后及时降解。

纳米药物递送
暂无介绍....
延伸阅读:
LNP内体逃逸:拼 “更快酸响应”,还是赌 “更强膜破坏”?真相是 —— 你得两个都要
可围绕可电离脂质头基、连接子、疏水尾和辅助脂质建立结构—功能筛选,并通过表观 pKa、pH 依赖膜扰动、Gal8 募集和...

PEG化生物材料:表面修饰策略,平衡传质效率与抗非特异吸附
PEG修饰是纳米递送载体、水凝胶、生物传感基底、组织工程支架较经典的表面“隐形化”手段。PEG链依靠水化层与空间排斥效应...
细胞穿膜肽PEG化修饰与功能基团偶联定制服务
细胞穿膜肽(CPP)PEG化修饰与功能基团偶联定制服务,支持TAT、R8、Penetratin等多肽的PEG1000-5...
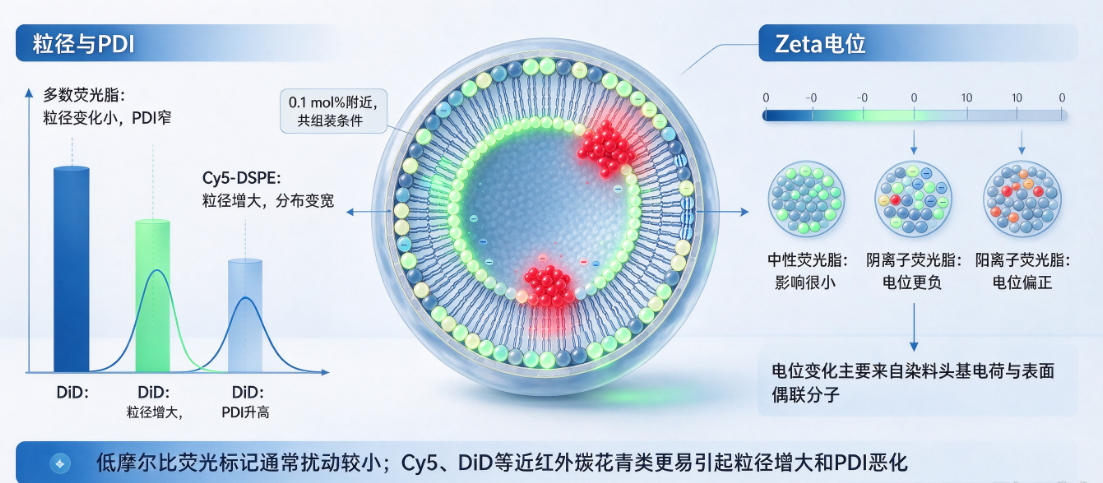
荧光标记操作过程对脂质体粒径、电位理化属性的影响特征
一、总体规律 在标准标记条件下(荧光脂用量 0.1 mol% 左右、成膜法共组装),多数荧光标记物对脂质体粒径和 Zet...
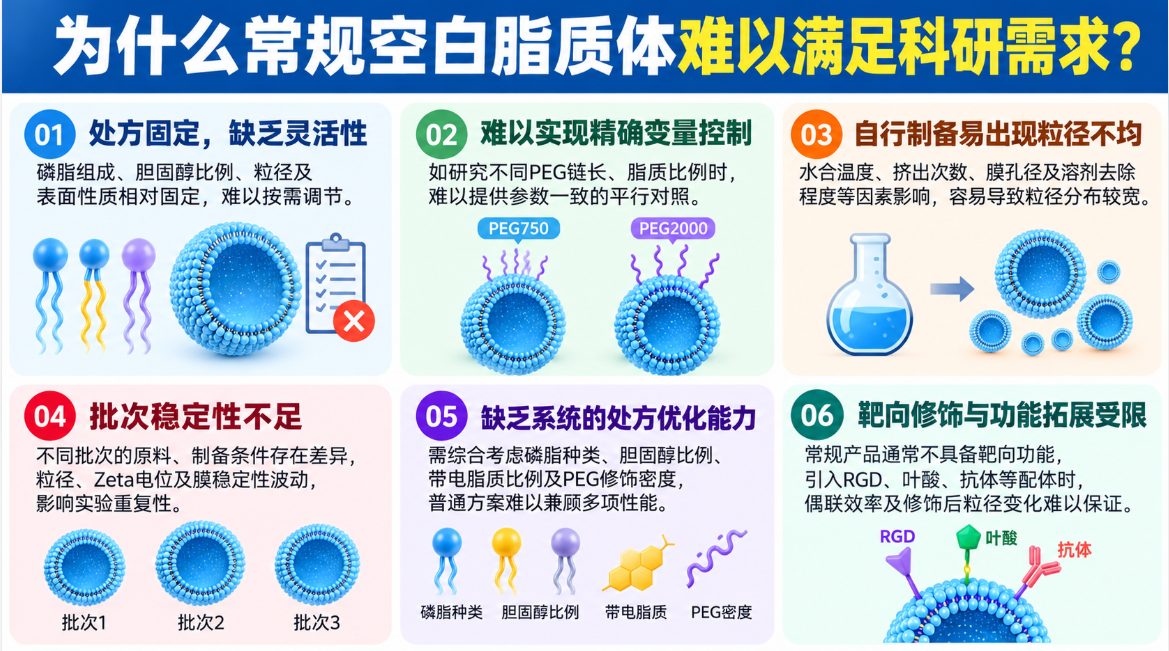
空白脂质体定制不只是制备!从粒径调控到靶向修饰的科研级解决方案
科研级空白脂质体定制服务,涵盖磷脂处方设计、粒径准确调控、PEG表面修饰及RGD、叶酸等靶向配体偶联。支持粒径80–20...